


Respiração celular é o conjunto de reações em que a célula oxida moléculas orgânicas, principalmente a glicose, e conserva parte da energia liberada na forma de ATP, a molécula que abastece a maior parte do trabalho celular. Na respiração aeróbica, que ocorre em animais, plantas, fungos e muitos microrganismos, os carbonos da glicose saem como gás carbônico (), e o oxigênio () recebe, no fim do processo, os elétrons retirados da glicose, formando água.
O artigo segue o caminho da glicose em quatro etapas: glicólise, oxidação do piruvato, ciclo de Krebs e cadeia respiratória com a ATP sintase. Ao longo delas, quatro perguntas organizam o estudo: onde cada etapa acontece, para onde vão os átomos da glicose, qual é o papel do oxigênio e como o fluxo de elétrons vira ATP. Com essas respostas, fica possível calcular o saldo energético, distinguir respiração de fermentação e prever o efeito de venenos e desacopladores.
Visão geral: da glicose ao ATP
A equação global da respiração aeróbica da glicose é:
O resumo "glicose → + + ATP" é útil, mas não é uma equação balanceada: nenhum átomo da glicose entra no ATP. O que a glicose fornece é energia, transferida por meio de elétrons.
Por que tantas etapas? Uma chama queima a glicose de uma vez, e toda a energia sai como calor e luz. Na célula, a oxidação é dividida em reações catalisadas por enzimas, e os elétrons passam por vários transportadores antes de chegar ao oxigênio. Liberar a energia em pequenas porções permite capturar parte dela: estima-se que cerca de 34% da energia da glicose seja conservada nessas vias, e o restante é liberado como calor.
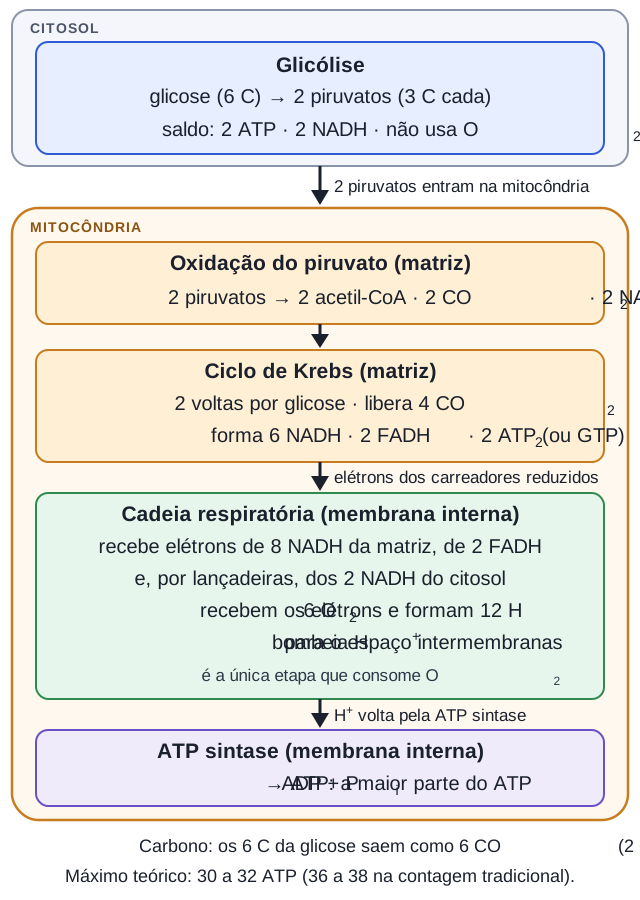
Na célula eucariótica, a glicólise ocorre no citosol e as demais etapas, na mitocôndria. Essa organela tem duas membranas; a interna forma dobras, as cristas, e envolve o compartimento mais interno, a matriz. Entre as duas membranas fica o espaço intermembranas. Esses três endereços (matriz, membrana interna, espaço intermembranas) aparecem o tempo todo neste artigo.
| Etapa | Onde ocorre (célula eucariótica) | Entra, por glicose | Sai, por glicose | Consome ? |
|---|---|---|---|---|
| Glicólise | Citosol | 1 glicose | 2 piruvatos, saldo de 2 ATP, 2 NADH | Não |
| Oxidação do piruvato | Matriz mitocondrial | 2 piruvatos | 2 acetil-CoA, , 2 NADH | Não |
| Ciclo de Krebs | Matriz mitocondrial | 2 acetil-CoA | , 6 NADH, , 2 ATP (ou GTP) | Não |
| Cadeia respiratória e ATP sintase | Membrana interna da mitocôndria | Elétrons do NADH e do , , ADP e | , e FAD reciclados, a maior parte do ATP | Sim |
Alguns livros juntam a oxidação do piruvato ao ciclo de Krebs e falam em três etapas; a contagem não muda o processo. Em procariotos, que não têm mitocôndrias, a oxidação do piruvato e o ciclo de Krebs ocorrem no citoplasma, e a cadeia respiratória fica na membrana plasmática.
Balanço de átomos e uso do oxigênio
A tabela mostra algo que confunde muita gente: só a última etapa consome , e é nela que se forma água. Separar a equação global em duas metades deixa isso visível.
Conferindo os oxigênios: os 12 átomos de oxigênio dos vêm da glicose (6) e da água (6); os 12 átomos do terminam na água formada na cadeia. Portanto, o não se transforma em . As 24 cargas de elétrons equivalem a 12 pares, entregues por 10 NADH e , como mostram as próximas seções.
O consumo de é, então, direto em uma única reação e indireto em todas as outras: glicólise, oxidação do piruvato e ciclo de Krebs não usam oxigênio, mas as etapas mitocondriais param sem ele, porque dependem dos carreadores que a cadeia devolve à forma oxidada.
A glicose é o exemplo clássico, não o único combustível. Ácidos graxos são quebrados na matriz mitocondrial em unidades de dois carbonos que formam acetil-CoA, e vários aminoácidos podem ser convertidos em piruvato, acetil-CoA ou intermediários do ciclo de Krebs. O ciclo e a cadeia respiratória servem, portanto, a açúcares, gorduras e proteínas.
Carreadores de elétrons: NAD e FAD
Oxidar uma substância é retirar elétrons dela; reduzir é fornecer elétrons. As duas coisas ocorrem juntas, em reações de oxirredução. Na respiração, os elétrons retirados da glicose costumam sair acompanhados de prótons, na forma de átomos de hidrogênio; por isso muitas das enzimas envolvidas se chamam desidrogenases.
Esses elétrons não vão direto ao oxigênio. Eles são entregues a coenzimas que funcionam como carregadores reutilizáveis: recebem elétrons em uma reação e os entregam em outra.
Os carreadores não são consumidos, e a quantidade deles na célula é pequena diante do fluxo de glicose. Por isso precisam ser reciclados o tempo todo: o NADH e o entregam os elétrons à cadeia respiratória e voltam à forma oxidada. Se essa devolução para, falta , e as reações que dependem dele também param. Essa única ideia explica por que o ciclo de Krebs depende do oxigênio, por que existe fermentação e por que os venenos da cadeia são tão perigosos.
Os dois carreadores não se comportam da mesma forma:
| NAD | FAD | |
|---|---|---|
| Onde é reduzido na respiração da glicose | Glicólise (citosol), oxidação do piruvato e ciclo de Krebs (matriz) | Ciclo de Krebs, na succinato desidrogenase |
| Mobilidade | Circula livre no compartimento em que está | Fica preso à enzima, na membrana interna |
| Por onde entrega elétrons à cadeia | Complexo I, no início da cadeia | Ubiquinona, depois do complexo I |
| Consequência | Mais prótons bombeados, mais ATP | Menos prótons bombeados, menos ATP |
Glicólise
A glicólise ("quebra da glicose") ocorre no citosol de células procarióticas e eucarióticas e não usa oxigênio. Em uma sequência de dez reações, uma glicose, com seis carbonos, é convertida em duas moléculas de piruvato, com três carbonos cada.
Esse ATP é formado por fosforilação no nível do substrato: uma enzima transfere um grupo fosfato de uma molécula intermediária diretamente para o ADP. É um mecanismo diferente do que forma a maior parte do ATP na mitocôndria.
Nenhum carbono sai da glicólise como : os seis continuam nos dois piruvatos, que ainda guardam a maior parte da energia da glicose.
A glicólise acontece com ou sem oxigênio. O que muda é o destino do piruvato e do NADH. Com oxigênio, o piruvato entra na mitocôndria, e os elétrons do NADH seguem para a cadeia. Sem oxigênio, muitas células devolvem os elétrons do NADH ao próprio piruvato, ou a uma molécula derivada dele, e regeneram o . Sem essa reciclagem, a segunda metade da glicólise desacelera ou para.
Ciclo de Krebs
Antes do ciclo: o piruvato vira acetil-CoA
Na célula eucariótica, o piruvato é transportado para a matriz mitocondrial. Ali, um complexo de enzimas faz três coisas com cada piruvato: remove um carbono, liberado como (descarboxilação); oxida o fragmento de dois carbonos que sobra, transferindo elétrons ao ; e liga esse fragmento, o grupo acetil, à coenzima A, formando acetil-CoA.
Para dois piruvatos, essa etapa, chamada oxidação do piruvato ou reação de transição, rende , 2 NADH e 2 acetil-CoA. São os primeiros carbonos da glicose liberados como gás carbônico.
O que acontece em cada volta
O ciclo de Krebs, também chamado ciclo do ácido cítrico ou dos ácidos tricarboxílicos, ocorre na matriz. O grupo acetil (2 C) se une ao oxaloacetato (4 C) e forma citrato (6 C). Em uma sequência de reações, o citrato perde dois carbonos como e é oxidado em várias etapas até o oxaloacetato ser regenerado. Como a molécula inicial volta ao ponto de partida, o processo é um ciclo.
O ciclo forma pouco ATP diretamente. Seu produto mais importante são os carreadores reduzidos, que levam à cadeia a maior parte da energia da glicose.
Quase todas as enzimas do ciclo estão dissolvidas na matriz. A exceção é a succinato desidrogenase, que forma o : ela fica embutida na membrana interna e também faz parte da cadeia respiratória, onde se chama complexo II.
Para onde vão os carbonos da glicose
| Etapa | Onde estão os carbonos ao final | liberado, por glicose |
|---|---|---|
| Glicólise | 2 piruvatos (3 C cada) | 0 |
| Oxidação do piruvato | 2 grupos acetil (2 C cada) | 2 |
| Ciclo de Krebs (2 voltas) | No balanço, os 4 C dos grupos acetil | 4 |
| Total | 6 |
Os seis carbonos da glicose saem como seis moléculas de , todas liberadas na matriz. A cadeia respiratória não libera . Um detalhe para quem quer precisão: os dois de uma volta não contêm necessariamente os carbonos do acetil que acabou de entrar; eles são liberados em voltas seguintes. No balanço, cada volta recebe dois carbonos e libera dois.
Cadeia respiratória e fosforilação oxidativa
Até aqui a glicose foi totalmente oxidada a , mas só 4 ATP foram formados. A maior parte da energia está nos 10 NADH e . A última etapa converte essa energia em ATP por dois processos acoplados: o transporte de elétrons pela cadeia respiratória e a síntese de ATP pela ATP sintase. O conjunto se chama fosforilação oxidativa: fosforilação porque adiciona fosfato ao ADP; oxidativa porque é movida pela oxidação dos carreadores.
O caminho dos elétrons até o oxigênio
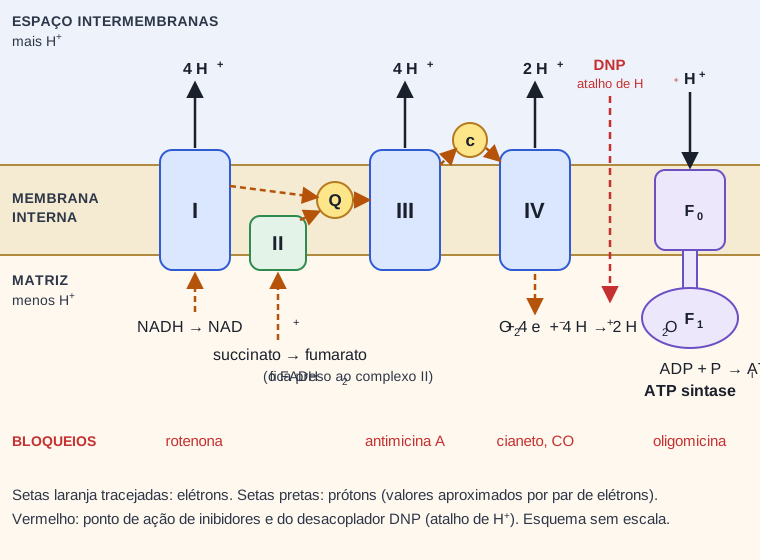
A cadeia é formada por quatro complexos proteicos presos à membrana interna (I, II, III e IV) e por dois transportadores móveis: a ubiquinona (coenzima Q), que se desloca dentro da membrana, e o citocromo c, uma pequena proteína que leva elétrons do complexo III ao IV.
A cada passagem, o elétron vai para um transportador com mais afinidade por elétrons; o oxigênio, no fim, é o de maior afinidade. Assim os elétrons "descem" pela cadeia liberando energia, e os complexos I, III e IV usam essa energia para bombear prótons () da matriz para o espaço intermembranas. O complexo II não bombeia.
O papel do oxigênio é, portanto, ser o aceptor final de elétrons. Sem , os elétrons não têm para onde ir: os transportadores ficam todos reduzidos, o fluxo para, a fosforilação oxidativa cessa e, em seguida, a falta de interrompe o ciclo de Krebs.
Gradiente de prótons e ATP sintase
O bombeamento deixa o espaço intermembranas com mais (mais ácido) e com excesso de carga positiva em relação à matriz. Essa diferença de concentração e de carga é um gradiente eletroquímico de prótons: energia armazenada, como água acumulada atrás de uma represa.
A membrana interna é praticamente impermeável ao . O caminho de volta à matriz é a ATP sintase, enzima que atravessa a membrana. Sua porção embutida () conduz os prótons e gira com a passagem deles; a porção voltada para a matriz () usa esse giro para unir ADP e . O mecanismo em que um gradiente de prótons através de uma membrana impulsiona a síntese de ATP é a quimiosmose; na respiração aeróbica da glicose, ele forma cerca de 90% do ATP.
Por que o NADH rende mais que o FADH₂
O número de ATP depende do número de prótons bombeados. Por par de elétrons, estima-se que o complexo I bombeie cerca de 4 prótons, o III cerca de 4 e o IV cerca de 2. Os elétrons do NADH passam pelos três: cerca de 10 prótons. Os do entram pela ubiquinona e passam só pelo III e pelo IV: cerca de 6 prótons.
A ATP sintase não consome todos os prótons do gradiente para si: parte dele é gasta para levar à matriz o fosfato usado na síntese e para trocar o ATP formado por ADP. Levando isso em conta, as estimativas atuais ficam em cerca de 2,5 ATP por NADH e 1,5 ATP por , o que corresponde a aproximadamente 4 prótons por ATP (; ). Os valores não são inteiros porque nenhuma reação liga um NADH a um número fixo de ATP: a ligação é feita pelo gradiente, uma grandeza contínua. Muitos livros didáticos usam os valores arredondados 3 e 2.
Saldo energético
Somando as etapas:
| Etapa | ATP formado diretamente | NADH | ||
|---|---|---|---|---|
| Glicólise (citosol) | 2 (saldo: 4 − 2) | 2 | 0 | 0 |
| Oxidação do piruvato (matriz) | 0 | 2 | 0 | 2 |
| Ciclo de Krebs (matriz, 2 voltas) | 2 | 6 | 2 | 4 |
| Total por glicose | 4 | 10 | 2 | 6 |
Transformar NADH e em número de ATP exige hipóteses. Um resultado só faz sentido quando elas estão claras.
Com as hipóteses 1 e 4, os números obtidos são máximos teóricos:
| Rendimento por carreador | NADH da glicólise entra como NADH | Entra como |
|---|---|---|
| 2,5 e 1,5 (estimativa atual) | 32 ATP | 30 ATP |
| 3 e 2 (contagem tradicional) | 38 ATP | 36 ATP |
O Exemplo intermediário, adiante, faz essas contas passo a passo. Nenhum dos quatro números está errado: cada um decorre de hipóteses diferentes. Em uma questão, use os valores dados no enunciado; sem eles, reconheça 30 a 32 como estimativa atual e 36 a 38 como contagem tradicional. Pela contagem tradicional, procariotos chegam a 38, porque o NADH da glicólise já está no mesmo compartimento que a cadeia.
Sobre a lançadeira, os livros didáticos costumam associar a via do FAD ao músculo esquelético e ao cérebro, e a via do NAD ao fígado, ao coração e aos rins. A divisão não é rígida: a lançadeira malato-aspartato, que entrega os elétrons ao , também funciona em mitocôndrias do cérebro.
Compare com a glicólise isolada, que forma 2 ATP por glicose: a oxidação completa rende cerca de 15 a 16 vezes mais pelas estimativas atuais (; ).
Respiração aeróbica, respiração anaeróbica e fermentação
O que caracteriza uma respiração celular, em sentido estrito, é uma cadeia transportadora de elétrons que entrega os elétrons a um aceptor final vindo de fora da via. O nome da respiração depende desse aceptor.
- Na respiração aeróbica, o aceptor final é o , que forma água.
- Na respiração anaeróbica, é outra substância, em geral inorgânica. Bactérias desnitrificantes do solo usam nitrato () e nitrito e liberam gás nitrogênio (); bactérias redutoras de sulfato formam sulfeto de hidrogênio (); arqueias metanogênicas reduzem a metano (). Há também aceptores orgânicos: a Escherichia coli pode usar o fumarato, que vira succinato. A respiração anaeróbica é típica de certos procariotos.
Na respiração anaeróbica, o gradiente de prótons gerado é menor e forma-se menos ATP que na aeróbica, porque esses aceptores atraem elétrons com menos intensidade que o oxigênio.
A fermentação é outro mecanismo. Não há cadeia transportadora: o NADH da glicólise devolve seus elétrons a uma molécula orgânica formada na própria via. O regenerado permite que a glicólise continue, e o ATP produzido é só o dela: 2 por glicose nas fermentações láctica e alcoólica.
- Na fermentação láctica, o piruvato recebe os elétrons e vira lactato. Ocorre em bactérias do iogurte, nas hemácias de mamíferos, que não têm mitocôndrias, e em músculos esqueléticos quando o oxigênio não acompanha a demanda.
- Na fermentação alcoólica, feita por leveduras, o piruvato perde , e o acetaldeído formado é reduzido a etanol.
| Respiração aeróbica | Respiração anaeróbica | Fermentação | |
|---|---|---|---|
| Aceptor final de elétrons | Outra substância, em geral inorgânica (nitrato, sulfato); às vezes orgânica (fumarato) | Molécula orgânica da própria via (piruvato ou derivado) | |
| Cadeia transportadora e gradiente de prótons | Sim | Sim, com gradiente menor | Não |
| ATP por glicose | Até cerca de 30 a 32 (máximo teórico, estimativa atual) | Menos que na aeróbica; depende do aceptor | 2 (láctica e alcoólica) |
| Produto formado a partir do aceptor | , ou , por exemplo | Lactato; ou etanol, com liberação de | |
| Exemplos | Humanos, plantas, fungos, muitas bactérias | Bactérias desnitrificantes e redutoras de sulfato, arqueias metanogênicas | Músculo em esforço intenso, bactérias do iogurte, leveduras |
Muitos procariotos são anaeróbios facultativos: obtêm energia com ou sem oxigênio e passam a respirar quando há um aceptor adequado, porque a respiração rende muito mais ATP por glicose. Anaeróbios obrigatórios, como bactérias do gênero Clostridium, vivem na ausência de oxigênio molecular e morrem quando expostos a ele. A fermentação e seus usos industriais têm tópico próprio; aqui, o essencial é a diferença de mecanismo.
Inibidores da cadeia respiratória
Um inibidor da cadeia bloqueia a passagem de elétrons em algum ponto. Seus efeitos seguem a lógica do acoplamento:
Cianeto
O cianeto se liga fortemente à citocromo c oxidase (complexo IV) e impede que ela entregue os elétrons ao oxigênio. A fosforilação oxidativa praticamente cessa, e o pouco ATP da glicólise não basta para órgãos que dependem de grande consumo de oxigênio.
A intoxicação mostra bem o mecanismo: o sangue continua chegando oxigenado, mas as células não conseguem usar o (hipóxia histotóxica). Por isso o sangue venoso volta com saturação de oxigênio mais alta que o normal, e há acúmulo de ácido lático. Oxigênio suplementar, sozinho, não resolve; o tratamento médico exige antídotos específicos.
O cianeto de hidrogênio pode ser liberado na queima de plásticos e outros materiais sintéticos com nitrogênio, o que torna a fumaça de incêndios uma fonte importante. Algumas plantas, como a mandioca, contêm compostos que liberam cianeto e exigem processamento adequado antes do consumo.
Monóxido de carbono
O monóxido de carbono (CO), formado na queima incompleta de combustíveis, atua em dois alvos:
- Hemoglobina. O CO se liga a ela com afinidade até 200 a 250 vezes maior que a do , formando carboxi-hemoglobina. O sangue passa a transportar menos oxigênio e a liberá-lo com mais dificuldade nos tecidos.
- Citocromo c oxidase. O CO também se liga ao complexo IV e perturba diretamente a respiração celular.
Por muito tempo, a explicação da intoxicação se concentrou na hemoglobina. Revisões recentes dão peso crescente aos efeitos diretos nos tecidos, incluindo a inibição da cadeia. Para o estudo, basta saber que os dois mecanismos se somam: chega menos oxigênio às células, e o que chega é mal aproveitado.
A comparação com o cianeto é útil. No cianeto, o oxigênio chega, mas não é usado. No CO, chega menos oxigênio, e parte do que chega também não é bem usada. Nos dois casos, a produção mitocondrial de ATP cai.
Outros inibidores
| Substância | Onde age | Consequência |
|---|---|---|
| Rotenona | Complexo I | Bloqueia a entrada dos elétrons do NADH; os do , que entram pela ubiquinona, ainda podem seguir |
| Antimicina A | Complexo III | Impede a passagem de elétrons da ubiquinona ao citocromo c |
| Cianeto, azida e CO | Complexo IV | Impedem a entrega de elétrons ao |
| Oligomicina | ATP sintase (não é componente da cadeia) | O ATP deixa de ser formado; o gradiente fica alto e freia o transporte de elétrons |
A oligomicina mostra o acoplamento em ação: não bloqueia nenhum complexo, mas, ao fechar a volta dos prótons pela ATP sintase, derruba o consumo de . O consumo não chega a zero porque alguns prótons vazam de volta pela membrana, e esse vazamento sustenta um pouco de respiração.
Desacopladores
Um desacoplador não bloqueia a cadeia. Ele abre um atalho: permite que o volte do espaço intermembranas à matriz sem passar pela ATP sintase. O resultado contraria a intuição de quem espera que "menos ATP" signifique "menos respiração".
O exemplo clássico é o 2,4-dinitrofenol (DNP), que torna a membrana interna permeável a prótons. Ele já foi usado como emagrecedor, justamente porque aumenta a oxidação de combustível; o uso médico foi abandonado pelos efeitos graves, com elevação descontrolada da temperatura corporal e mortes. Mesmo assim, voltou a ser vendido pela internet: uma revisão de 2011 reuniu 62 mortes atribuídas a ele na literatura médica.
Exemplos resolvidos
Distinções importantes
Respiração pulmonar e respiração celular. A primeira é a troca de gases entre ar e sangue; a segunda, a oxidação do combustível dentro das células. O expirado é produzido na matriz mitocondrial, e o inspirado é consumido no complexo IV.
Consumo direto e dependência indireta de oxigênio. Só o complexo IV consome . O ciclo de Krebs e a oxidação do piruvato não usam oxigênio, mas param sem ele, porque dependem do e do FAD regenerados pela cadeia.
Fosforilação no nível do substrato e fosforilação oxidativa. Na primeira, uma enzima transfere fosfato de uma molécula intermediária ao ADP (glicólise e ciclo de Krebs: 4 ATP por glicose). Na segunda, o gradiente de prótons movimenta a ATP sintase (a maior parte do ATP).
Respiração anaeróbica e fermentação. A respiração anaeróbica usa cadeia transportadora e um aceptor final diferente do , em geral inorgânico. A fermentação não usa cadeia: o NADH devolve os elétrons a uma molécula orgânica da própria via, e só se formam os 2 ATP da glicólise. "Sem oxigênio" não basta para classificar um processo.
Inibidor e desacoplador.
| Inibidor da cadeia (ex.: cianeto) | Inibidor da ATP sintase (ex.: oligomicina) | Desacoplador (ex.: DNP) | |
|---|---|---|---|
| Transporte de elétrons e consumo de | Param (bloqueio no complexo IV) | Caem bastante | Aumentam |
| Gradiente de prótons | Desfaz-se | Fica alto | Dissipa-se |
| ATP formado pela mitocôndria | Para | Para | Cai |
| Energia da oxidação | Deixa de ser liberada na cadeia | Liberação freada pelo gradiente | Liberada como calor |
Saldo máximo e rendimento real. Os 30 a 32 ATP (ou 36 a 38) são máximos teóricos sob hipóteses; o rendimento de uma célula real é menor e varia com o tecido e as condições.
Perguntas frequentes
Plantas fazem respiração celular?
Sim. As células vegetais têm mitocôndrias e respiram de dia e de noite, usando os açúcares que produzem na fotossíntese. Durante o dia, a fotossíntese costuma superar a respiração nas folhas iluminadas, e o balanço de gases visível é de liberação de ; isso esconde a respiração, mas não a interrompe.
Se a cadeia forma água, por que a equação global mostra só 6 H₂O?
Porque a equação global é um saldo. A cadeia forma 12 moléculas de água por glicose (6 recebendo 24 elétrons), mas 6 moléculas de água são consumidas em reações do ciclo de Krebs. A diferença, 6, é o que aparece do lado dos produtos.
Por que os livros dão números diferentes de ATP por glicose?
Porque usam hipóteses diferentes. Livros mais antigos e muitos materiais didáticos adotam 3 ATP por NADH e 2 por (36 a 38 por glicose). Medidas e modelos atuais indicam cerca de 2,5 e 1,5 (30 a 32). Além disso, o resultado muda com a lançadeira que traz os elétrons do NADH citosólico. Em uma questão, valem os dados do enunciado.
A falta de oxigênio no músculo em exercício intenso é o que causa a fermentação?
A fermentação láctica aumenta quando a produção de ATP pela via aeróbica não acompanha a demanda, por exemplo porque o oxigênio disponível não basta. Nessa situação, converter piruvato em lactato regenera o e mantém a glicólise funcionando. O músculo não para de respirar; a fermentação se soma à respiração para cobrir a demanda momentânea.
Por que um desacoplador aquece o corpo, se ele reduz a produção de ATP?
A energia liberada pelo transporte de elétrons não desaparece. Normalmente, parte dela fica guardada no gradiente e depois no ATP. Com o desacoplador, os prótons voltam por um atalho, e essa energia é liberada diretamente como calor. Como a cadeia acelera, mais combustível é oxidado e mais calor é produzido.
Por que a rotenona não bloqueia toda a respiração?
Porque ela age no complexo I, a porta de entrada dos elétrons do NADH. Os elétrons do formado pela succinato desidrogenase entram pela ubiquinona, depois do ponto bloqueado, e ainda chegam ao oxigênio pelos complexos III e IV. O consumo de cai muito, mas não necessariamente a zero, desde que haja succinato disponível.
Exercícios
Tente resolver antes de conferir a resposta.
Exercício 1
AutoralEm uma célula do fígado humano, a glicose é oxidada completamente pela respiração aeróbica. Qual associação entre etapa e local está correta?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa D. A cadeia respiratória fica na membrana interna da mitocôndria.
Resolução
Os complexos da cadeia respiratória, a ubiquinona e o citocromo c estão associados à membrana interna da mitocôndria, que forma as cristas. É ali que os elétrons chegam ao .
- A está errada: a glicólise ocorre no citosol.
- B está errada: o ciclo de Krebs ocorre na matriz mitocondrial. O espaço intermembranas é a região para onde a cadeia respiratória bombeia prótons.
- C está errada: em células eucarióticas, o piruvato entra na mitocôndria e é convertido em acetil-CoA na matriz.
- E está errada: a ATP sintase também está na membrana interna, porque aproveita o gradiente de prótons formado através dessa membrana.
Exercício 2
AutoralEm um experimento com células animais isoladas, todo o gás oxigênio disponível estava marcado com o isótopo pesado (), e a glicose fornecida não tinha marcação. Em qual produto o oxigênio marcado aparece diretamente, como resultado da reação da respiração celular que consome o ?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa E. O é o aceptor final de elétrons e forma água no complexo IV.
Resolução
A única reação da respiração celular que consome ocorre no complexo IV:
Glicólise, oxidação do piruvato e ciclo de Krebs não usam . Os oxigênios do vêm das moléculas orgânicas e da água que participa do ciclo de Krebs. A contagem de átomos confirma: separando a equação global em duas metades,
os 12 átomos de oxigênio do vêm da glicose e da água, e os 12 átomos do terminam na água. Somando as metades, 6 das 12 moléculas de água formadas repõem as 6 consumidas, e o saldo é a equação global, com .
- A e B estão erradas pelo motivo acima.
- C está errada: o ATP é formado a partir de ADP e fosfato inorgânico.
- D está errada: a glicólise não usa .
Uma ressalva vale para organismos inteiros observados por mais tempo. Em experimentos com animais que respiraram , o isótopo apareceu na água corporal e também no expirado. Isso acontece porque o oxigênio do se troca com o da água do corpo. A marcação chega ao por esse caminho indireto, depois de o ter formado água.
Exercício 3
AutoralUma pessoa exposta à fumaça de um incêndio foi diagnosticada com intoxicação por cianeto. Os exames mostram saturação de oxigênio no sangue venoso mais alta que o normal e acúmulo de ácido lático. Qual explicação está correta?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa A. Com o complexo IV bloqueado, o oxigênio chega aos tecidos, mas não é usado; a energia passa a vir da glicólise seguida de fermentação láctica.
Resolução
O cianeto se liga à citocromo c oxidase (complexo IV) e impede que os elétrons cheguem ao . Os tecidos passam a extrair muito pouco oxigênio do sangue, que volta pelas veias mais oxigenado que o normal (hipóxia histotóxica: o oxigênio chega, mas não é usado). Sem transporte de elétrons, o NADH não é reoxidado, o ciclo de Krebs para e a ATP sintase deixa de produzir ATP. Resta a glicólise, que mantém a produção de ATP regenerando pela conversão de piruvato em lactato; daí o acúmulo de ácido lático.
- B está errada: se o não se ligasse à hemoglobina, o sangue transportaria menos oxigênio, e o sangue venoso seria pobre, não rico, em .
- C está errada: o cianeto é um inibidor, não um desacoplador. Um desacoplador aumentaria o consumo de pelos tecidos, o que tenderia a reduzir o oxigênio do sangue venoso.
- D está errada: a glicólise continua e é justamente a fonte de ATP que resta.
- E está errada e inverte causa e consequência. O alvo do cianeto é o complexo IV, não a fermentação nem a hemoglobina. O aumento da fermentação láctica é consequência do bloqueio da cadeia; o oxigênio sobra no sangue venoso porque os tecidos deixam de usá-lo.
Exercício 4
AutoralConsidere que uma bactéria anaeróbia facultativa obtém 30 ATP por glicose na respiração aeróbica e 2 ATP por glicose na fermentação. Mantida a mesma demanda de ATP, o que acontece com o consumo de glicose quando essa bactéria deixa de fazer respiração aeróbica e passa a fermentar?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa C. O consumo de glicose fica 15 vezes maior.
Resolução
Se a célula precisa de moléculas de ATP, ela consome glicoses respirando e glicoses fermentando. A razão entre os consumos é:
A razão não depende de : vale para qualquer demanda de ATP.
- A inverte a razão. Como a fermentação rende menos ATP por glicose, o consumo aumenta, não diminui.
- B confunde o rendimento da fermentação (2 ATP) com a razão entre os consumos.
- D usa a diferença , e não a razão.
- E multiplica em vez de dividir.
O resultado depende dos valores adotados no enunciado. Com 32 ATP na respiração, a razão seria 16; com a contagem tradicional de 38, seria 19. Em qualquer caso, a célula que fermenta precisa consumir muito mais glicose para manter a mesma produção de ATP.
Exercício 5
AutoralO 2,4-dinitrofenol (DNP) transporta prótons do espaço intermembranas para a matriz mitocondrial, através da membrana interna, sem que eles passem pela ATP sintase. Em comparação com uma pessoa não exposta, espera-se que uma pessoa intoxicada por DNP apresente:
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa D. O DNP é um desacoplador: os elétrons continuam fluindo até o , mas a energia do gradiente é liberada como calor, e não usada para produzir ATP.
Resolução
Ao levar prótons de volta à matriz por fora da ATP sintase, o DNP dissipa o gradiente de prótons. A síntese de ATP pelas mitocôndrias cai, porque a ATP sintase depende do fluxo de prótons através dela. O transporte de elétrons não é bloqueado: sem o gradiente, que normalmente o freia, ele segue em ritmo alto, e o consumo de aumenta. A energia liberada, que não é conservada em ATP, se dissipa como calor, e a temperatura corporal sobe.
- A está errada: queda no consumo de é típica de um inibidor da cadeia, não de um desacoplador.
- B e C estão erradas: um desacoplador reduz a produção de ATP pelas mitocôndrias.
- E descreve o efeito de um inibidor da cadeia, como o cianeto, que interrompe o transporte de elétrons. O desacoplador faz o contrário: acelera o transporte e o consumo de .
Mesmo que o organismo tente compensar oxidando mais combustível, cada molécula de consumida passa a render menos ATP.
Exercício 6
AutoralDuas bactérias foram cultivadas sem oxigênio. A bactéria 1 oxida compostos orgânicos usando uma cadeia transportadora de elétrons na membrana plasmática e entrega os elétrons ao nitrato, que é convertido em gás nitrogênio. A bactéria 2, usada na produção de iogurte, degrada glicose a piruvato e converte o piruvato em lactato, sem usar cadeia transportadora de elétrons. Como se classificam os processos das duas bactérias?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa E. A bactéria 1 faz respiração anaeróbica; a bactéria 2 faz fermentação láctica.
Resolução
O critério é a presença de cadeia transportadora de elétrons e a natureza do aceptor final.
-
A bactéria 1 usa uma cadeia transportadora e um aceptor final inorgânico diferente do , o nitrato. Isso é respiração anaeróbica; é o que fazem as bactérias desnitrificantes do solo.
-
A bactéria 2 não usa cadeia transportadora. O NADH da glicólise devolve seus elétrons ao piruvato, uma molécula orgânica, que vira lactato. Isso é fermentação láctica.
-
A usa o critério errado: a ausência de oxigênio não torna um processo fermentação. Com cadeia transportadora de elétrons e um aceptor final externo, como o nitrato, há respiração.
-
B está errada porque não há no processo da bactéria 1.
-
C está errada porque "sem oxigênio" também não basta para caracterizar respiração anaeróbica: sem cadeia transportadora, o processo da bactéria 2 é fermentação.
-
D inverte as classificações.
Exercício 7
AutoralNa cadeia respiratória, cada par de elétrons do NADH leva à formação de cerca de 2,5 ATP, e cada par de elétrons do , de cerca de 1,5 ATP. Qual afirmação explica essa diferença?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa B. Os elétrons do não passam pelo complexo I, então bombeiam menos prótons.
Resolução
A quantidade de ATP depende do número de prótons bombeados. Os elétrons do NADH passam pelos complexos I, III e IV, que bombeiam cerca de prótons. Os elétrons do entram pela ubiquinona e passam só pelos complexos III e IV: cerca de prótons. Com aproximadamente 4 prótons por ATP:
- A está errada: os elétrons do passam pela ubiquinona e pelos complexos III e IV antes de chegar ao .
- C está errada: o do ciclo de Krebs é formado pela succinato desidrogenase, que fica na própria membrana interna da mitocôndria; ele não precisa atravessar membrana alguma.
- D está errada: a ATP sintase aproveita qualquer próton do gradiente, qualquer que seja a origem da energia que o bombeou.
- E está errada: a energia do é aproveitada pela fosforilação oxidativa.
Referências
- OpenStax Biology 2e — 4.3 Eukaryotic Cells
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 4, seção 4.3, trecho Mitochondria. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 6.1 Energy and Metabolism
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 6, seção 6.1, subtítulo Carbohydrate Metabolism. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.1 Energy in Living Systems
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.1, subtítulos Electrons and Energy, Electron Carriers e ATP in Living Systems. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.2 Glycolysis
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.2, subtítulos First Half, Second Half (até o Step 10) e Outcomes of Glycolysis. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.3 Oxidation of Pyruvate and the Citric Acid Cycle
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.3, subtítulos Breakdown of Pyruvate, Citric Acid Cycle e Products of the Citric Acid Cycle. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.4 Oxidative Phosphorylation
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.4, subtítulos Electron Transport Chain, Complex II, Complex IV, Chemiosmosis e ATP Yield. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.5 Metabolism without Oxygen
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.5, subtítulos Anaerobic Cellular Respiration, Lactic Acid Fermentation, Alcohol Fermentation e Anaerobic Cellular Respiration versus Fermentation. Reaberto em 27/09/2026.
- OpenStax Biology 2e — 7.6 Connections of Carbohydrate, Protein, and Lipid Metabolic Pathways
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 7, seção 7.6. Reaberto em 27/09/2026.
- OpenStax Microbiology — 8.2 Catabolism of Carbohydrates
Parker, N.; Schneegurt, M.; Thi Tu, A.-H.; Lister, P.; Forster, B. M. Microbiology. Houston: OpenStax, 2016. Capítulo 8, seção 8.2, trechos Transition Reaction e Krebs Cycle. Reaberto em 27/09/2026.
- OpenStax Microbiology — 8.3 Cellular Respiration
Parker, N.; Schneegurt, M.; Thi Tu, A.-H.; Lister, P.; Forster, B. M. Microbiology. Houston: OpenStax, 2016. Capítulo 8, seção 8.3, trechos Anaerobic Respiration e The Total ATP Yield. Reaberto em 27/09/2026.
- OpenStax Microbiology — 8.4 Fermentation
Parker, N.; Schneegurt, M.; Thi Tu, A.-H.; Lister, P.; Forster, B. M. Microbiology. Houston: OpenStax, 2016. Capítulo 8, seção 8.4. Reaberto em 27/09/2026.
- Kaiser, G. Microbiology (Kaiser) — 18.3E: Theoretical ATP Yield
LibreTexts Biology; texto de Gary Kaiser, Community College of Baltimore County. Seção 18.3E. Reaberto em 27/09/2026.
- Biava, H. (adapt.). CHE 301 Biochemistry — 8.7 Energy yield by complete oxidation of glucose
Chemistry LibreTexts, Brevard College; material adaptado de G. Kaiser e de Ball et al. Seção 8.7. Consultado em 27/09/2026.
- Dienel, G. A.; Lauritzen, M. A budget for brain metabolic water production by glucose catabolism during rest, rises in activity and sleep. Fluids and Barriers of the CNS, v. 22, art. 44, 2025
Texto completo aberto (PMC12057207, lido via Europe PMC em 27/09/2026): seção Electron transport chain and oxidative phosphorylation e Apêndice, Tabela 2 (reações que consomem e produzem água).
- Jakubowski, H.; Flatt, P. Fundamentals of Biochemistry, vol. II — 19.2 ATP Synthesis
Biology LibreTexts, seção 19.2. Consultado em 27/09/2026.
- Ahern, K.; Rajagopal, I.; Tan, T. Biochemistry Free For All — 5.2 Electron Transport and Oxidative Phosphorylation
Biology LibreTexts (Oregon State University), seção 5.2, trechos sobre inibidores, oligomicina, desacopladores e termogenina. Consultado em 27/09/2026.
- Agency for Toxic Substances and Disease Registry (ATSDR). Toxicological Profile for Cyanide, Draft for Public Comment — Chapter 3
ATSDR/CDC, versão preliminar para consulta pública, capítulo 3 (Toxicokinetics, Biomarkers, Chemical Interactions), seções 3.1 e 3.3.2. PDF lido em 27/09/2026.
- Doman, G.; Aoun, J.; Truscinski, J.; Truscinski, M.; Aouthmany, S. Cyanide Poisoning. Journal of Education and Teaching in Emergency Medicine, v. 7, n. 3, p. S1-S25, 2022
Texto completo aberto (PMC10332703, lido via Europe PMC em 27/09/2026): Introduction e Pathophysiology.
- Savioli, G. et al. Carbon Monoxide Poisoning: From Occupational Health to Emergency Medicine. Journal of Clinical Medicine, v. 13, n. 9, art. 2466, 2024
Texto completo aberto (PMC11084260, lido via Europe PMC em 27/09/2026): seções sobre propriedades, exposição e fisiopatologia.
- Brand, M. D.; Nicholls, D. G. Assessing mitochondrial dysfunction in cells. Biochemical Journal, v. 435, n. 2, p. 297-312, 2011
Texto completo aberto (PMC3076726, lido via Europe PMC em 27/09/2026): trechos sobre estado 4 com oligomicina e respiração desacoplada por FCCP.
- Grundlingh, J.; Dargan, P. I.; El-Zanfaly, M.; Wood, D. M. 2,4-Dinitrophenol (DNP): a weight loss agent with significant acute toxicity and risk of death. Journal of Medical Toxicology, v. 7, n. 3, p. 205-212, 2011
Resumo (lido via Europe PMC em 27/09/2026).
- Westerterp, K. R. Doubly labelled water assessment of energy expenditure: principle, practice, and promise. European Journal of Applied Physiology, v. 117, n. 7, p. 1277-1285, 2017
Texto completo aberto (PMC5486561, lido via Europe PMC em 27/09/2026): Introdução e Tabela 1 (Lifson et al., 1949).
- Cypess, A. M. et al. Identification and importance of brown adipose tissue in adult humans. New England Journal of Medicine, v. 360, n. 15, p. 1509-1517, 2009
Resumo (Background, Methods, Results), lido via Europe PMC em 27/09/2026.
- Hughes, D. A.; Jastroch, M.; Stoneking, M.; Klingenspor, M. Molecular evolution of UCP1 and the evolutionary history of mammalian non-shivering thermogenesis. BMC Evolutionary Biology, v. 9, art. 4, 2009
Texto completo aberto (PMC2627829, lido via Europe PMC em 27/09/2026): Background.
- Iverson, T. M.; Luna-Chavez, C.; Cecchini, G.; Rees, D. C. Structure of the Escherichia coli fumarate reductase respiratory complex. Science, v. 284, n. 5422, p. 1961-1966, 1999
Resumo (lido via Europe PMC em 27/09/2026).
- Contreras, L.; Satrústegui, J. Calcium signaling in brain mitochondria: interplay of malate aspartate NADH shuttle and calcium uniporter/mitochondrial dehydrogenase pathways. Journal of Biological Chemistry, v. 284, n. 11, p. 7091-7099, 2009
Resumo (lido via Europe PMC em 27/09/2026).