


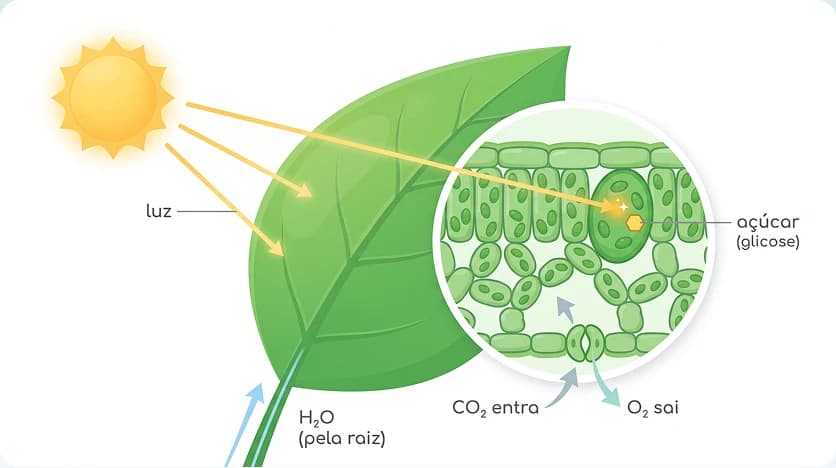
Fotossíntese é o processo em que plantas, algas e cianobactérias usam a energia da luz para fabricar açúcares a partir de gás carbônico () e água, liberando gás oxigênio (). Ela é a principal porta de entrada de energia e de carbono nos ecossistemas: o açúcar produzido abastece o próprio organismo fotossintetizante e, por meio das cadeias alimentares, quase todos os outros seres vivos.
O artigo acompanha o processo pelo cloroplasto: primeiro a fase fotoquímica, que transforma energia luminosa em ATP e NADPH e quebra a água; depois o ciclo de Calvin, que usa esses produtos para fixar o carbono. Com esse mecanismo em mãos, fica possível responder de onde vem o oxigênio liberado, para onde vai o carbono, por que luz, e temperatura limitam a velocidade do processo e o que significa o ponto de compensação entre fotossíntese e respiração.
Visão geral: da luz ao açúcar
A equação resumida mais comum é:
As duas equações têm o mesmo saldo: cancelando 6 moléculas de água dos dois lados da segunda, obtém-se a primeira. A segunda, porém, é a que permite rastrear os átomos, como se verá adiante. Nenhuma delas é o mecanismo: a glicose não é montada de uma vez, e o não sai do .
O cloroplasto e a folha
Nas plantas, a fotossíntese ocorre principalmente nas células do mesofilo, o tecido intermediário da folha. O entra e o sai por pequenas aberturas reguláveis da epiderme, os estômatos.
Dentro dessas células, o processo acontece nos cloroplastos. Cada cloroplasto é envolvido por duas membranas e contém, mergulhados em um líquido chamado estroma, sacos achatados chamados tilacoides. As pilhas de tilacoides são os grana (singular: granum), e o espaço interno de cada tilacoide é o lúmen. A clorofila fica na membrana dos tilacoides.
Esses endereços dividem o trabalho em duas fases:
| Fase fotoquímica (reações dependentes de luz) | Ciclo de Calvin (reações independentes de luz) | |
|---|---|---|
| Onde ocorre | Membrana dos tilacoides (e lúmen) | Estroma |
| Depende de | Luz, água, , , | , ATP, NADPH |
| Produz | ATP, NADPH e | Açúcar (G3P), ADP, e reciclados |
| Papel | Converte energia luminosa em energia química e quebra a água | Fixa o carbono do em moléculas orgânicas |
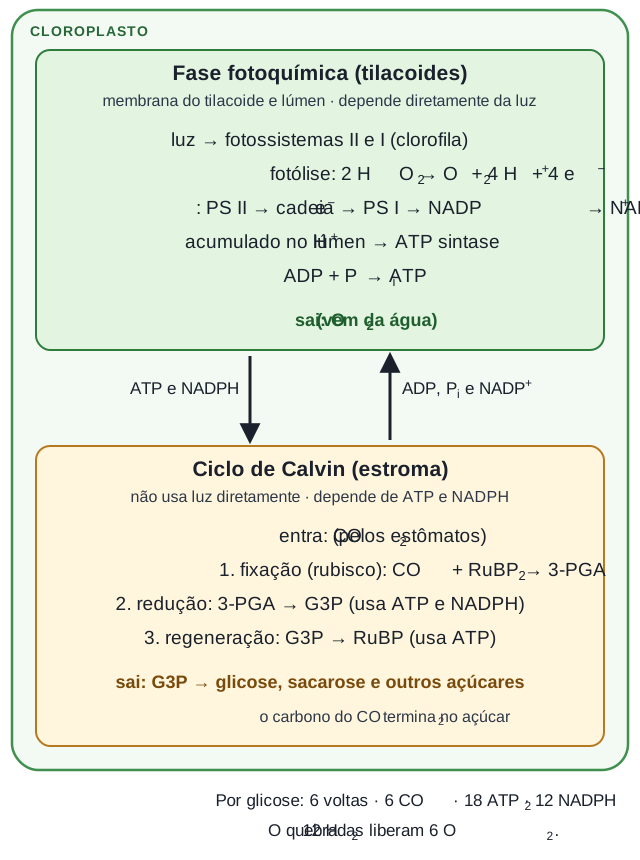
As duas fases dependem uma da outra: a fase fotoquímica fornece ATP e NADPH ao ciclo de Calvin, e o ciclo devolve ADP, fosfato e , que voltam a ser carregados nos tilacoides. Se uma para, a outra também para em pouco tempo.
De onde vem o oxigênio e para onde vai o carbono
Pela equação resumida, parece possível que o liberado venha do . Não vem. Experimentos com o isótopo pesado de oxigênio, , a partir de Ruben e colaboradores, em 1941, mostraram que o oxigênio liberado tem a marcação da água fornecida à planta; hoje se aceita amplamente que a água é o substrato direto da produção fotossintética de .
Em resumo: o vem da água, e o carbono do açúcar vem do . É por isso que a equação com 12 moléculas de água é a mais útil para responder a questões de rastreamento.
Fase clara: fotoquímica, fotólise e fotossistemas
A fase clara, ou fotoquímica, reúne as reações que dependem diretamente da luz. Ela ocorre na membrana dos tilacoides.
Pigmentos e fotossistemas
A luz é absorvida por pigmentos. As clorofilas a e b absorvem principalmente a luz azul e a vermelha e refletem a verde, o que explica a cor das folhas. Os carotenoides absorvem outras faixas e ajudam a dissipar o excesso de energia como calor, protegendo o aparelho fotossintético.
Os pigmentos estão organizados em fotossistemas, complexos de proteínas e pigmentos presos à membrana do tilacoide. Cada fotossistema tem um conjunto de pigmentos-antena, que captam a luz e repassam a energia, e um centro de reação, onde um par especial de clorofilas a perde um elétron excitado. Há dois tipos, nomeados pela ordem de descoberta, não pela ordem de funcionamento:
- fotossistema II, cujo centro de reação é chamado P680;
- fotossistema I, cujo centro de reação é chamado P700.
Do fotossistema II ao NADPH
A fotólise pode ser escrita assim:
Gradiente de prótons e ATP
Os prótons liberados pela fotólise e os bombeados pela cadeia se acumulam no lúmen. Como a membrana do tilacoide é pouco permeável a eles, o único caminho de volta ao estroma é a ATP sintase, e esse fluxo move a síntese de ATP a partir de ADP e . É o mesmo princípio da mitocôndria, a quimiosmose, com uma diferença de endereço: no cloroplasto, os prótons se acumulam dentro do tilacoide e o ATP é formado no estroma, justamente onde o ciclo de Calvin vai usá-lo.
| Cloroplasto (fase fotoquímica) | Mitocôndria (cadeia respiratória) | |
|---|---|---|
| Fonte da energia | Luz | Oxidação de moléculas orgânicas |
| Doador de elétrons | Água, que libera | NADH e |
| Aceptor final de elétrons | , que forma NADPH | , que forma água |
| Onde os prótons se acumulam | Lúmen do tilacoide | Espaço intermembranas |
| Onde se forma o ATP | Estroma | Matriz |
A comparação mostra que os dois processos são quase espelhados: a fotossíntese usa luz para tirar elétrons da água e liberar ; a respiração entrega elétrons ao e forma água.
Fase escura: o ciclo de Calvin
O ciclo de Calvin ocorre no estroma. Ele não usa luz diretamente, mas consome ATP e NADPH produzidos pela fase fotoquímica. Sua tarefa é a fixação do carbono: incorporar o carbono do , uma molécula inorgânica, em açúcares.
O balanço fica claro contando por 3 moléculas de :
O G3P que sai do ciclo pode ser convertido em glicose, sacarose e outros açúcares. Com a adição de nitrogênio, fósforo e outros elementos absorvidos do ambiente, a planta usa esses açúcares para fabricar as demais moléculas orgânicas de que precisa. O carbono que estava no ar passa a fazer parte do corpo da planta.
Uma conta liga as duas fases. Formar 12 NADPH exige 24 elétrons; como cada molécula de água fornece 2, é preciso quebrar 12 moléculas de água, o que libera . É exatamente o que mostra a equação com .
Fatores que influenciam a fotossíntese
A velocidade da fotossíntese pode ser medida pelo absorvido, pelo liberado ou pelo açúcar acumulado em um intervalo de tempo. Ela depende de condições do ambiente, e três se destacam: intensidade luminosa, concentração de e temperatura.
Um experimento clássico de Frederick Blackman, em 1905, mostrou esse comportamento. Com luz fraca, aumentar a temperatura quase não alterava a velocidade da fotossíntese; com luz forte, a temperatura passava a ter efeito importante. A interpretação foi que o processo tem uma etapa que depende da luz e outra, enzimática, que depende da temperatura, uma das pistas históricas de que a fotossíntese tem duas fases.
Intensidade luminosa
No escuro, não há fotossíntese, e a planta apenas respira. À medida que a luz aumenta, a fase fotoquímica produz mais ATP e NADPH, e a fotossíntese acelera, quase em proporção direta com a luz em intensidades baixas. Em luz forte, a curva se achata: a planta atinge a saturação luminosa, e mais luz não aumenta a taxa, porque outra etapa, como a fixação do , passou a limitar. Luz excessiva, especialmente combinada com calor, pode até reduzir a eficiência (fotoinibição).
Concentração de CO₂
O é o substrato da rubisco. Em luz forte, aumentar a concentração de costuma acelerar a fotossíntese, até que outro fator limite. A rubisco também tem uma fraqueza: ela pode ligar à RuBP em vez de . Essa reação, a fotorrespiração, consome , libera e desfaz parte do trabalho de fixação. Concentração alta de e baixa de favorece a fixação; o contrário favorece a fotorrespiração.
A entrada de depende dos estômatos abertos. Em tempo quente e seco, a planta tende a fechá-los para perder menos água; com isso, o interno cai, o produzido se acumula e a fotossíntese diminui. Por esse caminho, a disponibilidade de água também afeta a fotossíntese.
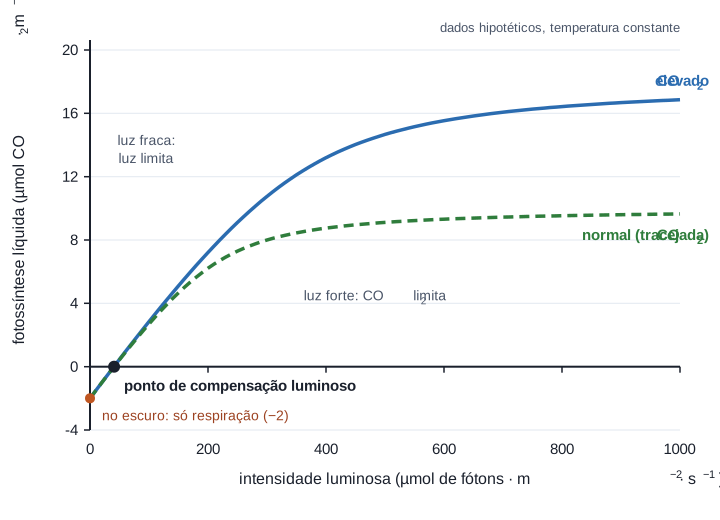
O gráfico, com dados hipotéticos, resume os dois fatores. Em luz fraca, as duas curvas praticamente coincidem: a luz limita, e mais ajuda pouco. No modelo simplificado do gráfico, não ajuda nada; em plantas C₃ reais, o elevado também reduz a fotorrespiração e eleva um pouco a curva mesmo em luz fraca. Em luz forte, a curva com normal se estabiliza perto de 10, enquanto a curva com elevado sobe até perto de 17: ali, o fator limitante é o , e não a luz.
Temperatura
As reações do ciclo de Calvin são catalisadas por enzimas, e a velocidade delas depende da temperatura. Em geral, a taxa aumenta com o aquecimento até uma temperatura ótima, que varia entre espécies, e cai acima dela, quando as enzimas perdem eficiência. O calor também favorece a fotorrespiração: em luz intensa e temperaturas acima de cerca de 30 °C, a rubisco liga com mais frequência. E, como mostrou Blackman, o efeito da temperatura só aparece bem quando a luz não é o fator limitante.
| Fator | Efeito quando aumenta | Limite do efeito |
|---|---|---|
| Intensidade luminosa | Acelera a fase fotoquímica e, por consequência, a fotossíntese | Saturação luminosa; luz excessiva pode causar fotoinibição |
| Concentração de | Acelera a fixação pela rubisco e reduz a fotorrespiração | Outro fator passa a limitar, como a luz |
| Temperatura | Acelera as reações enzimáticas até o ótimo | Acima do ótimo, as enzimas perdem eficiência e a fotorrespiração aumenta |
Fotossíntese e respiração: ponto de compensação
As plantas também respiram. Suas células têm mitocôndrias e fazem respiração celular o tempo todo, de dia e de noite, consumindo e açúcar e liberando . Durante o dia, as duas coisas acontecem ao mesmo tempo, e o que se mede nas trocas gasosas de uma folha é o saldo entre elas.
Em escala de ecossistema, a mesma lógica aparece como produtividade primária bruta e líquida: a líquida é a energia que resta nos produtores depois da respiração deles e fica disponível para os consumidores.
No gráfico anterior, o ponto de compensação luminoso fica perto de 40 unidades de luz, onde as curvas cruzam o zero. Abaixo dele, a planta perde mais do que absorve; acima, tem saldo positivo de açúcar.
Ao longo de um dia, a luz varia, e a planta passa duas vezes pelo ponto de compensação.
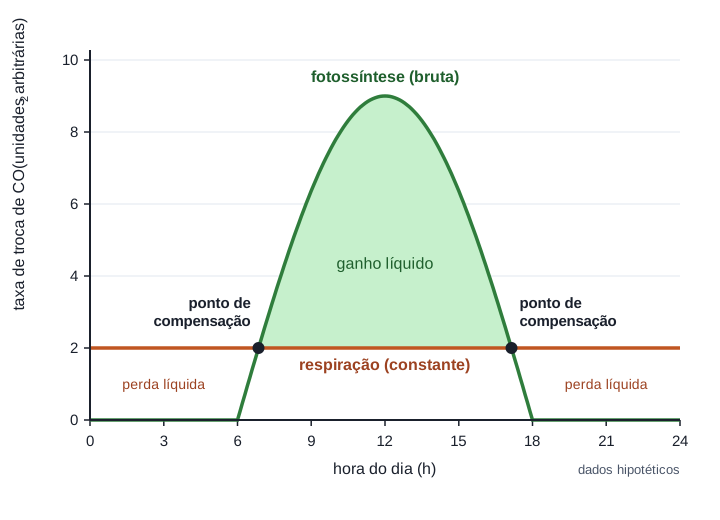
O gráfico usa hipóteses que é preciso tornar explícitas: a respiração foi considerada constante ao longo do dia, a temperatura não variou e a fotossíntese acompanhou só a luz. Com essas hipóteses:
- antes das 6 h e depois das 18 h, não há fotossíntese: a planta só respira e perde matéria orgânica;
- entre 6 h e cerca de 6h50, e entre cerca de 17h10 e 18 h, já há fotossíntese, mas ela ainda é menor que a respiração: o saldo continua negativo;
- nos dois pontos de compensação, fotossíntese bruta e respiração se igualam;
- entre eles, a fotossíntese supera a respiração, e a área sombreada representa o ganho líquido do dia.
A planta só cresce se o ganho do período iluminado superar as perdas das 24 horas. Uma planta mantida, durante todo o período iluminado, exatamente no ponto de compensação não perde nem ganha durante a luz, mas perde à noite, e ao longo dos dias consome suas reservas.
O valor do ponto de compensação não é fixo. Uma respiração mais alta exige mais luz para ser compensada e eleva o ponto de compensação; uma respiração mais baixa o reduz. Plantas com ponto de compensação baixo conseguem saldo positivo com pouca luz, o que é uma vantagem em ambientes sombreados e nas horas de luz fraca. Esse raciocínio está por trás da distinção entre plantas umbrófilas (de sombra), que tendem a ter ponto de compensação mais baixo, e heliófilas (de sol), que precisam de mais luz para compensar a respiração.
Exemplos resolvidos
Distinções importantes
Fotossíntese e respiração celular. Não são processos alternativos, em que a planta faria um de dia e outro à noite. A respiração ocorre sempre; a fotossíntese, só com luz. Durante o dia, as duas coexistem, e as trocas gasosas mostram o saldo.
Fase clara e fase escura. A diferença não é o horário, mas a dependência direta de luz. A fase escura acontece de dia, porque depende do ATP e do NADPH da fase clara, e para logo depois que a luz acaba.
Origem do O₂ e destino do CO₂. O liberado vem da água, quebrada nos tilacoides. O carbono do vai para o açúcar, fixado no estroma. Os oxigênios do terminam no açúcar e na água formada.
Fotossíntese bruta e líquida. A bruta é tudo o que a planta fixa; a líquida é o que sobra depois da respiração. Uma medida de trocas gasosas em luz dá a líquida; a bruta exige somar a respiração, medida no escuro.
Ponto de compensação e ponto de saturação. No ponto de compensação, a fotossíntese líquida é zero; no de saturação, mais luz já não aumenta a fotossíntese. O primeiro fica em luz fraca, e o segundo, em luz forte.
Fotólise e fotorrespiração. Fotólise é a quebra da água pela luz, que libera na fase clara. Fotorrespiração é a reação da rubisco com , que consome e libera , reduzindo a fixação.
Perguntas frequentes
Por que as folhas são verdes?
Porque as clorofilas absorvem principalmente a luz azul e a vermelha e refletem a verde. A luz verde que chega aos nossos olhos é justamente a parte menos aproveitada pela fotossíntese. Em experimentos clássicos com algas iluminadas por um espectro de cores, a liberação de oxigênio foi maior nas faixas azul e vermelha.
Uma planta no quarto "rouba" oxigênio durante a noite?
À noite, sem luz, a planta só respira: consome e libera , como os animais. A quantidade depende do tamanho da planta e das condições, mas o sentido da troca não muda: no escuro, o saldo de trocas gasosas de uma planta é de consumo de oxigênio e liberação de gás carbônico.
O que são plantas C₄ e CAM?
São plantas com mecanismos que reduzem a fotorrespiração. Plantas C₄, como o milho, a cana-de-açúcar e o sorgo, capturam o primeiro em uma molécula de 4 carbonos e o concentram em células onde a rubisco trabalha; separam as etapas no espaço. Plantas CAM, como cactos, abacaxi e bromélias epífitas, abrem os estômatos à noite, guardam o em ácidos orgânicos e o liberam para o ciclo de Calvin durante o dia, com os estômatos fechados; separam as etapas no tempo e economizam água.
Se o ciclo de Calvin produz G3P, por que a equação fala em glicose?
A glicose é uma forma conveniente de somar o balanço: duas moléculas de G3P de saída correspondem a uma glicose. Na célula, o G3P pode formar glicose, sacarose, que é transportada para outras partes da planta, e outros açúcares, que servem de matéria-prima para as demais moléculas orgânicas.
Aumentar a luz sempre aumenta a fotossíntese?
Não. Em luz fraca, sim, porque a luz é o fator limitante. Acima do ponto de saturação, mais luz não acelera o processo, porque o ou a temperatura passam a limitar. Luz excessiva, sobretudo com calor, pode até reduzir a eficiência da fotossíntese.
Por que a fotossíntese e a respiração parecem equações invertidas?
Porque, no saldo, uma desfaz o que a outra faz: a fotossíntese usa e água para formar açúcar e ; a respiração usa açúcar e para formar e água. Os mecanismos, porém, são diferentes: ocorrem em organelas diferentes, com enzimas e transportadores diferentes, e a energia vem da luz em uma e da oxidação do açúcar na outra.
Exercícios
Tente resolver antes de conferir a resposta.
Exercício 1
AutoralEm uma célula do mesofilo de uma folha iluminada, qual afirmação sobre o local e a origem dos produtos da fotossíntese está correta?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa D. Os prótons acumulados no lúmen voltam ao estroma pela ATP sintase, que forma ATP no lado do estroma, onde o ciclo de Calvin o consome.
Resolução
Na fase fotoquímica, a fotólise da água e o transporte de elétrons acumulam prótons no lúmen do tilacoide. O único caminho de volta ao estroma é a ATP sintase, que usa esse fluxo para formar ATP a partir de ADP e fosfato. O ATP fica no estroma, onde o ciclo de Calvin o usa na redução do 3-PGA e na regeneração da RuBP.
- A está errada: o vem da água, quebrada nos tilacoides. O carbono do vai para o açúcar, e seus oxigênios, para o açúcar e para a água formada.
- B está errada: a fotólise ocorre no fotossistema II, na membrana do tilacoide, e seus elétrons seguem para a cadeia de transporte até o , não para a rubisco.
- C está errada: a rubisco e todo o ciclo de Calvin ficam no estroma.
- E inverte os papéis: o NADPH é produzido na fase fotoquímica e consumido no ciclo de Calvin.
Exercício 2
AutoralUma alga foi mantida sob luz forte, com abundante, e de repente foi transferida para o escuro, sem mudar a temperatura nem o disponível. O que se espera nos minutos seguintes?
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
Alternativa B. Sem luz, a fase fotoquímica para; o estoque de ATP e NADPH se esgota logo, e o ciclo de Calvin para junto.
Resolução
O ciclo de Calvin não usa luz diretamente, mas consome ATP e NADPH a cada volta: 9 ATP e 6 NADPH por 3 fixados. Esses carreadores só são recarregados na fase fotoquímica, que depende da luz. No escuro, a reserva disponível é consumida em pouco tempo, a redução do 3-PGA e a regeneração da RuBP param, e a fixação de cessa, mesmo com disponível.
- A confunde o nome antigo com o funcionamento: "fase escura" só significa que as reações não usam luz diretamente; elas ocorrem de dia.
- C está errada: a liberação de vem da fotólise, que depende da luz e para no escuro. O ciclo de Calvin não quebra água.
- D está errada: a respiração ocorre continuamente, com ou sem luz. No escuro, é o único processo das duas, e a alga passa a liberar e consumir .
- E está errada: a fotólise ocorre no fotossistema II e depende da excitação do P680 pela luz.
Exercício 3
AutoralUma planta aquática foi estudada em duas intensidades de luz e três temperaturas. Em cada temperatura, mediu-se também a respiração no escuro. Os valores são hipotéticos, em unidades arbitrárias de por hora; considere que a respiração na luz é igual à medida no escuro, na mesma temperatura.
| Temperatura | Respiração (escuro) | liberado, luz fraca | liberado, luz forte |
|---|---|---|---|
| 15 °C | 1 | 4 | 8 |
| 25 °C | 2 | 3 | 16 |
| 35 °C | 4 | 1 | 10 |
(a) Calcule a fotossíntese bruta nas seis condições. (b) Em qual intensidade de luz a temperatura afeta a fotossíntese bruta? Explique. (c) Por que o liberado em luz fraca diminui com o aquecimento? (d) Proponha uma explicação para a queda entre 25 °C e 35 °C em luz forte.
Ver resposta e resoluçãoOcultar resposta e resolução
Resposta
(a) Luz fraca: 5, 5 e 5; luz forte: 9, 18 e 14 (15, 25 e 35 °C). (b) Só em luz forte; em luz fraca a luz é o fator limitante. (c) A fotossíntese bruta não muda, mas a respiração aumenta, e o saldo cai. (d) Acima do ótimo, as enzimas do ciclo de Calvin perdem eficiência e a fotorrespiração aumenta; ao mesmo tempo, a respiração dobra.
Resolução
Leitura dos dados. O liberado por uma planta iluminada é a fotossíntese líquida. Pela hipótese do enunciado, a respiração na luz é a medida no escuro.
(a) Bruta = líquida + respiração:
| Temperatura | Luz fraca | Luz forte |
|---|---|---|
| 15 °C | ||
| 25 °C | ||
| 35 °C |
(b) Em luz fraca, a fotossíntese bruta é 5 nas três temperaturas: a velocidade está limitada pela produção de ATP e NADPH na fase fotoquímica, e acelerar as enzimas do ciclo de Calvin não adianta. Em luz forte, a bruta varia de 9 para 18 e para 14: sem limitação pela luz, a velocidade passa a depender das reações enzimáticas, sensíveis à temperatura. É o mesmo padrão observado por Blackman.
(c) Em luz fraca, a produção bruta de é constante, mas o consumo pela respiração cresce de 1 para 4. O saldo, que é o que se mede, cai de 4 para 1. Se o aquecimento continuasse e a respiração chegasse a 5, a planta estaria no ponto de compensação nessa luz.
(d) A bruta cai de 18 para 14 porque 35 °C está acima da temperatura ótima dessa planta nos dados: as enzimas do ciclo de Calvin perdem eficiência, e o calor favorece a fotorrespiração, em que a rubisco liga em vez de . A líquida cai ainda mais, de 16 para 10, porque a respiração também subiu, de 2 para 4.
Conferência. Em nenhum caso a bruta é menor que a respiração, o que seria incompatível com liberado positivo. A conclusão sobre qual fator limita vale para esta planta e para estes valores; outra espécie pode ter outro ótimo de temperatura.
Referências
- OpenStax Biology 2e — 8.1 Overview of Photosynthesis
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 8, seção 8.1, subtítulos Main Structures and Summary of Photosynthesis e The Two Parts of Photosynthesis. Consultado em 27/09/2026.
- OpenStax Biology 2e — 8.2 The Light-Dependent Reactions of Photosynthesis
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 8, seção 8.2, subtítulos Understanding Pigments, How Light-Dependent Reactions Work e Generating an Energy Carrier: ATP. Consultado em 27/09/2026.
- OpenStax Biology 2e — 8.3 Using Light Energy to Make Organic Molecules
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 8, seção 8.3, subtítulos The Calvin Cycle (Stage 1, 2 e 3) e Photosynthesis in Prokaryotes / Energy Cycle. Consultado em 27/09/2026.
- OpenStax Biology 2e — 4.3 Eukaryotic Cells
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 4, seção 4.3, trecho Mitochondria. Consultado em 27/09/2026.
- OpenStax Biology 2e — 46.2 Energy Flow through Ecosystems
Clark, M. A.; Douglas, M.; Choi, J. Biology 2e. Houston: OpenStax, 2018. Capítulo 46, seção 46.2, subtítulo Productivity within Trophic Levels. Consultado em 27/09/2026.
- The Science of Plants — 11.2 Light and Photosynthesis
The Science of Plants. University of Minnesota Libraries Publishing, 2022 (CC BY-NC 4.0), seção 11.2. Consultado em 27/09/2026.
- Shevela, D.; Messinger, J. Studying the oxidation of water to molecular oxygen in photosynthetic and artificial systems by time-resolved membrane-inlet mass spectrometry. Frontiers in Plant Science, v. 4, art. 473, 2013
Texto completo aberto (PMC3840314, lido via Europe PMC em 27/09/2026): subtítulo 'Is water the immediate substrate of photosynthetic O2 evolution?' e referência a Ruben et al. (1941), J. Am. Chem. Soc. 63, 877-879.
- Shipunov, A. Introduction to Botany — 3.1 Discovery of Photosynthesis
Shipunov, A. Introduction to Botany. Biology LibreTexts, domínio público. Seção 3.1. Consultado em 27/09/2026.
- Shipunov, A. Introduction to Botany — 3.3 Enzymatic Stage
Shipunov, A. Introduction to Botany. Biology LibreTexts, domínio público. Seção 3.3. Consultado em 27/09/2026.
- Shipunov, A. Introduction to Botany — 3.4 C4 Pathway
Shipunov, A. Introduction to Botany. Biology LibreTexts, domínio público. Seção 3.4. Consultado em 27/09/2026.
- Shipunov, A. Introduction to Botany — 3.5 True Respiration
Shipunov, A. Introduction to Botany. Biology LibreTexts, domínio público. Seção 3.5. Consultado em 27/09/2026.
- BIO 5 General Botany — 8.3 Photosynthesis Overview and Equation
Friedrich Finnern, T. (org.). BIO 5: General Botany. Norco College, Biology LibreTexts (ASCCC OERI), páginas adaptadas de OpenStax Biology 2e por M. Ha. Seção 8.3. Consultado em 27/09/2026.
- BIO 5 General Botany — 8.4 Discovery of Photosynthesis
Friedrich Finnern, T. (org.). BIO 5: General Botany. Norco College, Biology LibreTexts (ASCCC OERI), páginas adaptadas de OpenStax Biology 2e por M. Ha. Seção 8.4. Consultado em 27/09/2026.
- BIO 5 General Botany — 8.6 Light-independent Reactions
Friedrich Finnern, T. (org.). BIO 5: General Botany. Norco College, Biology LibreTexts (ASCCC OERI), páginas adaptadas de OpenStax Biology 2e por M. Ha. Seção 8.6. Consultado em 27/09/2026.
- BIO 5 General Botany — 8.7 Photorespiration and Photosynthetic Pathways
Friedrich Finnern, T. (org.). BIO 5: General Botany. Norco College, Biology LibreTexts (ASCCC OERI), páginas adaptadas de OpenStax Biology 2e por M. Ha. Seção 8.7. Consultado em 27/09/2026.
- de Santana, E. N. et al. Photosynthetic Light Response Curve and Photosynthetic Performance of Cacao (Theobroma cacao L.) Genotypes Grown Under Full Sun Field Conditions. Plants, v. 14, n. 23, art. 3555, 2025
Texto completo aberto (PMC12694073, lido via Europe PMC em 27/09/2026): Introdução, Resultados (Tabela 1) e Discussão; experimento em Linhares (ES).